Bir hücrenin içine girildiğinde, insan eritrositinin sığası — o şeffaf, hafif pembe tonunu taşıyan sitoplazma — aslında milyonlarca mikroskobik oksijen taşıyıcısının dans ettiği bir sahne gibi görünür. Ama bu dans, rastgele bir hareketlilik değil; binlerce yıl evrimsel mühendisliğin, atomik hassasiyetle işlenmiş bir makinenin ritmik çalışmasıdır. Hemoglobin, bu makinenin kalbidir. Ve hikayesi, tek bir molekülün başına indirgenmiş bir biyokimya epikidir.
Tetramerin Doğuşu: İki Alfa, İki Beta
1869’da İngiliz fizikçi Sir Joseph Lockyer, kanın kırmızı rengine ve oksijen taşımaya aracılık eden maddeye “hemoglobin” adını verdiğinde, aslında henüz bilinmeyen bir yapıyı adlandırmişti. Yüzyıllar sonra Max Perutz ve John Kendrew tarafından X-ışını kristalografisiyle çözülen bu yapı, biyolojinin en etkileyici buluşlarından biri olarak tarihe geçti. Perutz, hemoglobinin üç boyutlu yapısını aydınlatırken, 1962’de bu alandaki öncü çalışmalar için Nobel Ödülü’nü kazandı — çünkü atomların nasıl dizildiğini, ışığın kırılışını sayarak okumayı başardı.
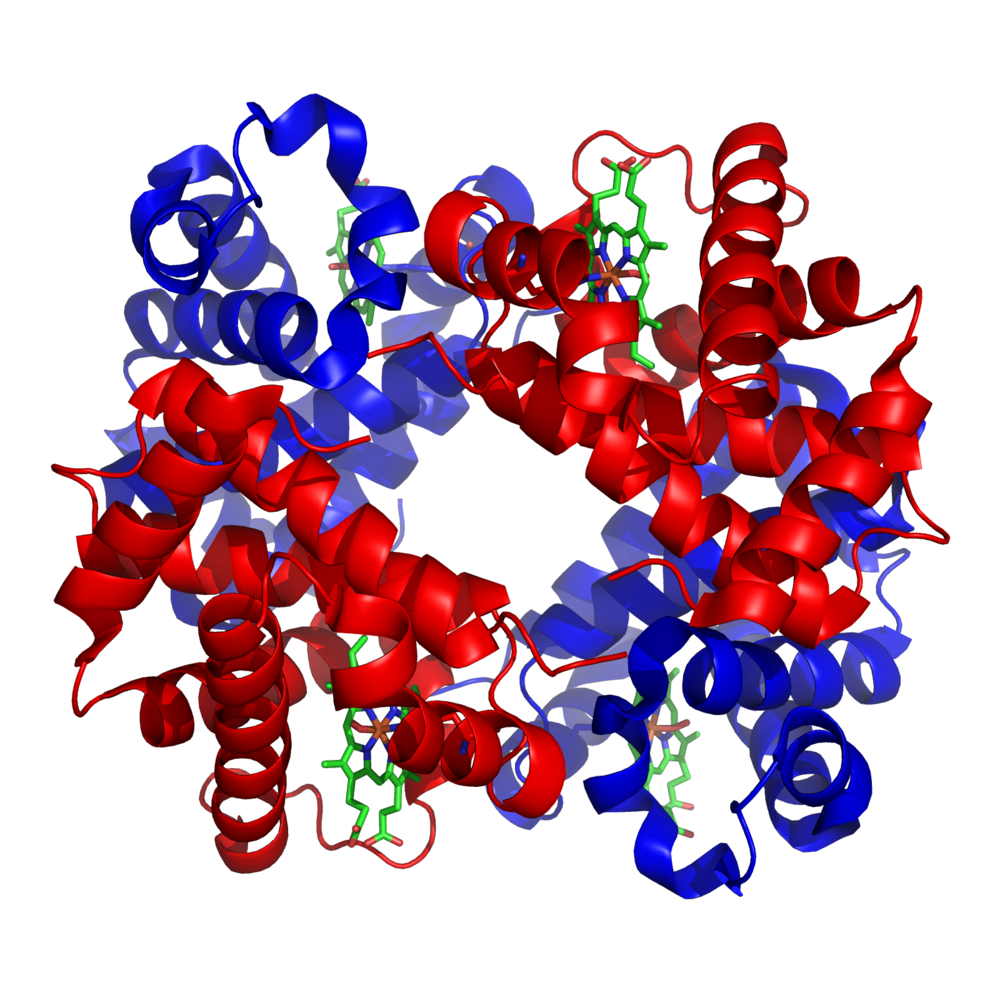
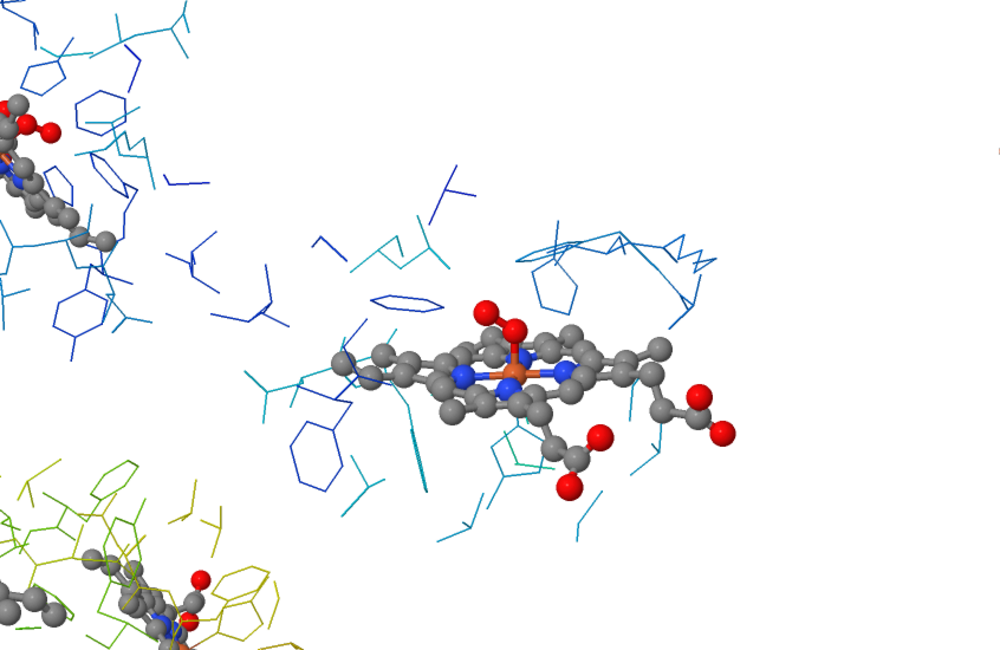
Hemoglobin A (HbA), insanın yetişkin kanının hâkim taşıyıcısıdır ve iki alfa (α) ile iki beta (β) polipeptid alt birminden oluşan bir tetramerdir. Bu dört zincir, yaklaşık 64.5 kDa ağırlığında, çok katmanlı bir kompleks oluşturur. UniProtKB Protein Bilgi Tabanında bu alt birimler, beta zinciri için P69905 ve alfa zinciri için P68871 accession numaraları altında saklanır. Her bir alt birim, kendi içinde gizli bir “demir odası” barındırır: merkezinde bir protoporfirin IX halkası etrafında dönen, oksijenle doğrudan bağ kurabilen bir demir iyonu (Fe²⁺).
Protoporfirin IX, dört piritol halkasından ve merkezi bir metin grupından oluşan karmaşık bir makrosiklik yapıdır. Bu halka, Fe²⁺ iyonunu dört azot atomu üzerinden sarar. Demir iyonu, oksijene bağlanırken planar düzleminden hafifçe dışarı, heme çukurundan yaklaşık 0.4 Å kadar yükselir. Bu mikroskobik hareket, devasa bir biyokimyasal olayın tetikleyicisi olan devasa bir değişimin ilk kıvılcını çakar.
Allosterik Geçiş: T’den R’ye Dans
Hemoglobinin en büyüleyici özelliği, oksijeni bağladığında kendisini yeniden biçimlendirmesidir. Bu, biyokimyada “allosterik” denilen bir davranıştır: bir molekülün, bağladığı yerden uzakta başka bölgelerde değişikliklere yol açması. Oksijensiz hemoglobin, “Tense” (gergin) olarak adlandırılan T formunda durur. Bu form, oksijene karşı daha az duyarlıdır, daha az bağlar. Ama ilk bir oksijen molekülü bağlanınca, o alt birim T’den “Relaxed” (rahat) formuna, yani R formuna geçiş yapar.
Bu tek başına bir olaydan çok daha fazlasıdır. Çünkü geçiş, o alt birime yayılır. R formundaki bir alt birimin komşu alt birimlerle arasındaki temas yüzeyleri değişir, aralarındaki köprüler yeniden kurulur. Sonuç: komşu alt birimler artık oksijene karşı daha duyarlı hale gelir, oksijeni daha kolay bağlar. Bu, “kooperatif bağlanma” (kooperatifite) olarak adlandırılır. Birinci oksijen bağlanmak en zorudur; bir kez kapı açıldığında, geriye kalan kapılar birer birer kolayca açılır.
Bu davranışı nicel olarak ölçmek için bilim insanları Hill katsayısını kullanır. İdeal bir molekülün Hill katsayısı 1’dir — bağlamada bağımsızdır. Hemoglobin ise yaklaşık 2.8 ile 3.0 arasında bir Hill katsayısına sahiptir. Bu değer, dört oksijen bağlamasında bile, bağlanma olayının neredeyse üçe kadar “birbirini tetikleyen” bir takım gibi davrandığını gösterir. Bu, hemoglobinin tek bir molekül değil, birbirine bağlı, iletişim kuran bir ağı olduğunu kanıtlar.
Bohr Etkisi: pH ve Karbondioksitin Ritmi
Hemoglobin, oksijeni bağladığında R formunda, oksijeni bıraktığında T formunda kalır. Ve bu form geçişi, vücudun metabolik durumuna göre esnek bir şekilde ayarlanır. İşte Bohr etkisi devreye girer. Vücut hücreleri, enerji üretirken karbondioksit (CO₂) üretir. Bu CO₂, suda çözündüğünde karbonik aside dönüşür ve çözünür asit-baz dengesi üzerinden proton (H⁺) salar. pH düşer, ortam daha asidik hale gelir.
Bohr etkisi, bu asidik ortamın hemoglobinin oksijene bağlanmasını azalttığını gösterir. Düşük pH ve yüksek CO₂, hemoglobini T formuna, yani oksijeni bırakmaya daha yatkın bir duruma iter. Bu, mükemmel bir fizyolojik mantığa dayanır: Vücut hücreleri oksijene ihtiyaç duyduğu an — metabolizma hızlandığında, CO₂ ve asit arttığında — hemoglobin, tam da orada, tam da o anda oksijeni serbest bırakır. Bohr etkisi, hemoglobini basit bir taşıyıcıdan, metabolik aktiviteye göre kendini ayarlayan bir “akıllı” sensöre dönüştürür.
Bu etki, oksijen dissosiyasyon eğrisinde sağa bir kayma olarak görülür. Eğri, dokuda oksijeni daha kolay bırakacak şekilde, dokuların ihtiyacına göre şekillenir. Karaciğer, kas, beyin gibi aktif dokularda bu kayma belirgindir. Bohr etkisinin tersi de vardır: Akciğerde, CO₂ atılır, pH yükselir, ortam daha bazik hale gelir. Bu, hemoglobinin oksijeni daha sıkı bağlamasını sağlar. Yani hemoglobin, akciğerde oksijeni alır, dokuda bırakır — ve bunu, vücudun kimyasal dilini okuyarak yapar.
2,3-BPG ve Allosterik Düet
Bohr etkisinin yanı sıra, hemoglobini dengeleyen başka bir güçlü allosterik düzenleyici vardır: 2,3-bisfosfogliserat (2,3-BPG). Bu molekül, iki beta alt birimi arasındaki bir çukurda yer alır ve özellikle oksijensiz (T) formunu sabitleyerek, oksijeni bırakmaya yatkın bir duruma hapseder. Yüksek rakımlarda, yüksek irtifada yaşayan insanlarda, kronik oksijen yetersizliğine uyum sağlamak için eritrositler daha fazla 2,3-BPG üretir. Bu, hemoglobinin oksijeni daha kolay bırakmasını sağlar — böylece nadir oksijen molekülünün bile dokulara ulaşmasını kolaylaştırır. Evrim, hemoglobine birden fazla, birbirini tamamlayan ayar mekanizması armağan etmiştir.
Glu6Val Mutasyonu: Tek Bir Değişimin Dev Fiyatı
Şimdi hikayenin en karanlık ve en çarpıcı bölümüne gelince. Hemoglobinin beta zincirinde, sekizinci amino asitten birincisi olan 6. pozisyonda, glutamat (Glu) bulunur. Bu asit, negatif yüklü, hidrofilik (suy sever) bir amino asittir. UniProtKB’deki P69905 kaydı, bu pozisyonu hassas bir şekilde tanımlar. İşte orak hücre anemisinin (sickle cell anemia) kökeni, bu tek bir pozisyondaki bir değişimde yatar: glutamat, valin (Val) ile yer değiştirir. Bu, beta-globin geninde (HBB) tek bir baz değişikliğinden kaynaklanan en ünlü mutasyondur.
Bu değişimin sonucu, görünüşte küçük ama fiziksel olarak yıkıcıdır. Glutamat, yüklü ve polar bir grup taşıdı; valin ise hidrofobik (suyu sevmeyen), yağ benzeri bir yan zincirdir. Bu yeni valin, beta alt biriminin yüzeyinde bir “hidrofobik niş” (hidrofobik çukur) oluşturur. Oksijensiz hemoglobin S (HbS) molekülünde, bu niş, başka bir HbS molekülündeki komplementer bir hidrofobik bölgeyle (beta zincirindeki hidrofobik çukurlar) tam olarak eşleşir.
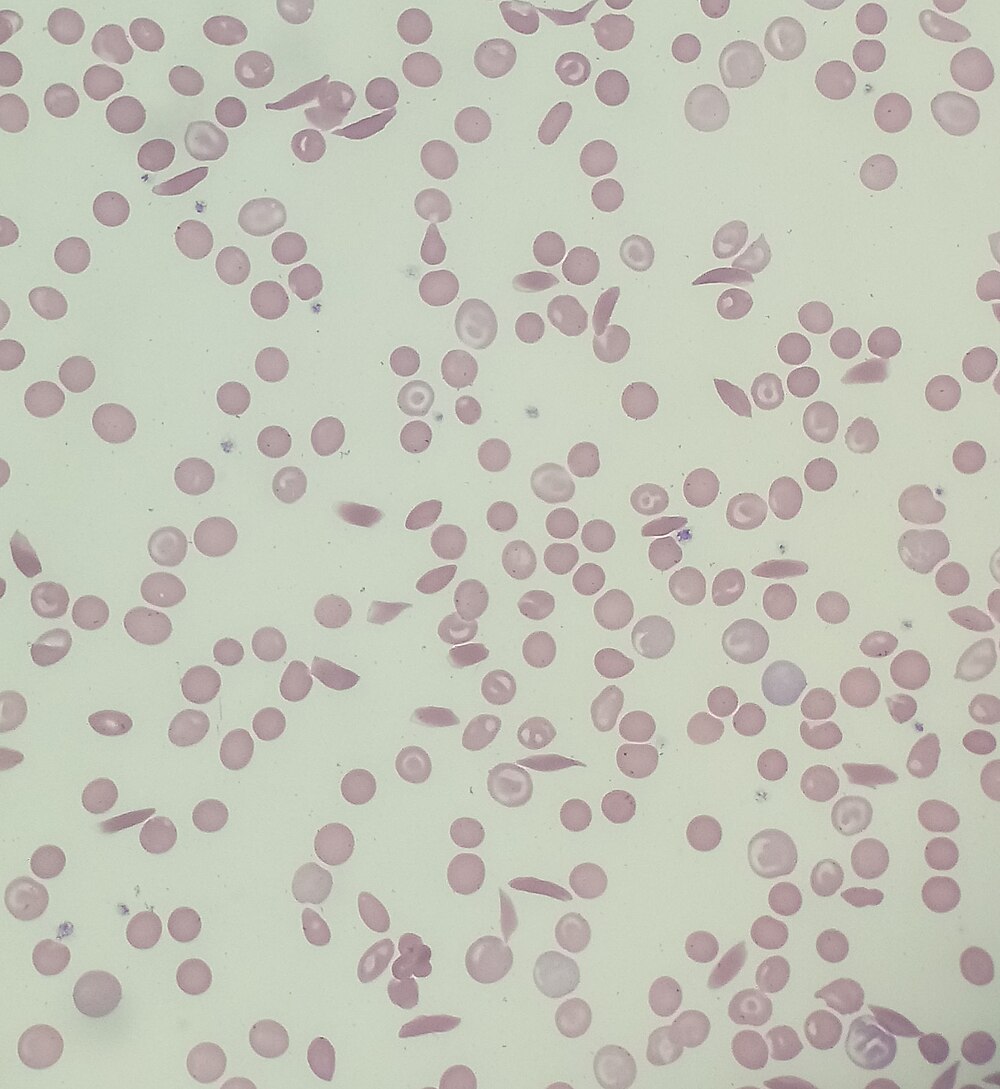
Ve burada biyofizik, kimyadan dramatik biçimde devralır. Oksijensiz HbS molekülleri, birbirleriyle bu niş-dolu (niche-dock) etkileşimi aracılığıyla uzun, lifli polimerler oluştururlar. Bu polimerizasyon, eritrositlerin içine uzun çubuklar halinde girer ve hücreyi büker, büker, sonunda orak (ay) şeklinde deformasyon yapar. Tek bir amino asit değişimi, bir molekülü birbirine kilitlerken, binlerce molekülü bir araya getirip kristal benzeri lifler oluşturur. Bu, biyokimyada “birlikte etki” (amplifikasyon) prensibinin en çarpıcı örneğidir: mikroskobik bir hata, makroskobik bir hastalığa yol açar.
Orak Hücrenin Fizyolojisi: Bükük Kan Yolları
Oraklaşmış eritrositler, sadece biçim olarak bozulmuş hücreler değildir; işlevsel olarak da bozulmuşlardır. Normal, yuvarlak eritrositler, dar damarların içinden kolayca sürtünmeden geçer. Orak hücreli hücreler ise birbirine yapışır, damarları tıkar, kan akışını bozar. Bu “vazoklanji” (damar


OKUYUCU TOPLULUĞU
0 değerlendirme
Deneyimlerinizi paylaşabilirsiniz; tanı, tedavi veya acil durum için yorumlar yerine sağlık uzmanına başvurun.